새끼 쥐가 걷는 법을 배우면 해마의 지도도 자란다
ICLR 2026 구두 발표 ‘From movement to cognitive maps’ 짧게 읽기
From movement to cognitive maps: recurrent neural networks reveal how locomotor development shapes hippocampal spatial codingICLR 2026 Oral
한 줄 요약
새끼 쥐의 움직임이 자라는 순서 그대로 RNN에 다음 장면을 예측하게 하면, 장소세포와 머리 방향 세포가 실제 쥐의 발달과 비슷한 순서로 생기고, 모델이 짚은 새 현상 하나가 실제 기록에서도 확인된다.
무엇이 달라졌나
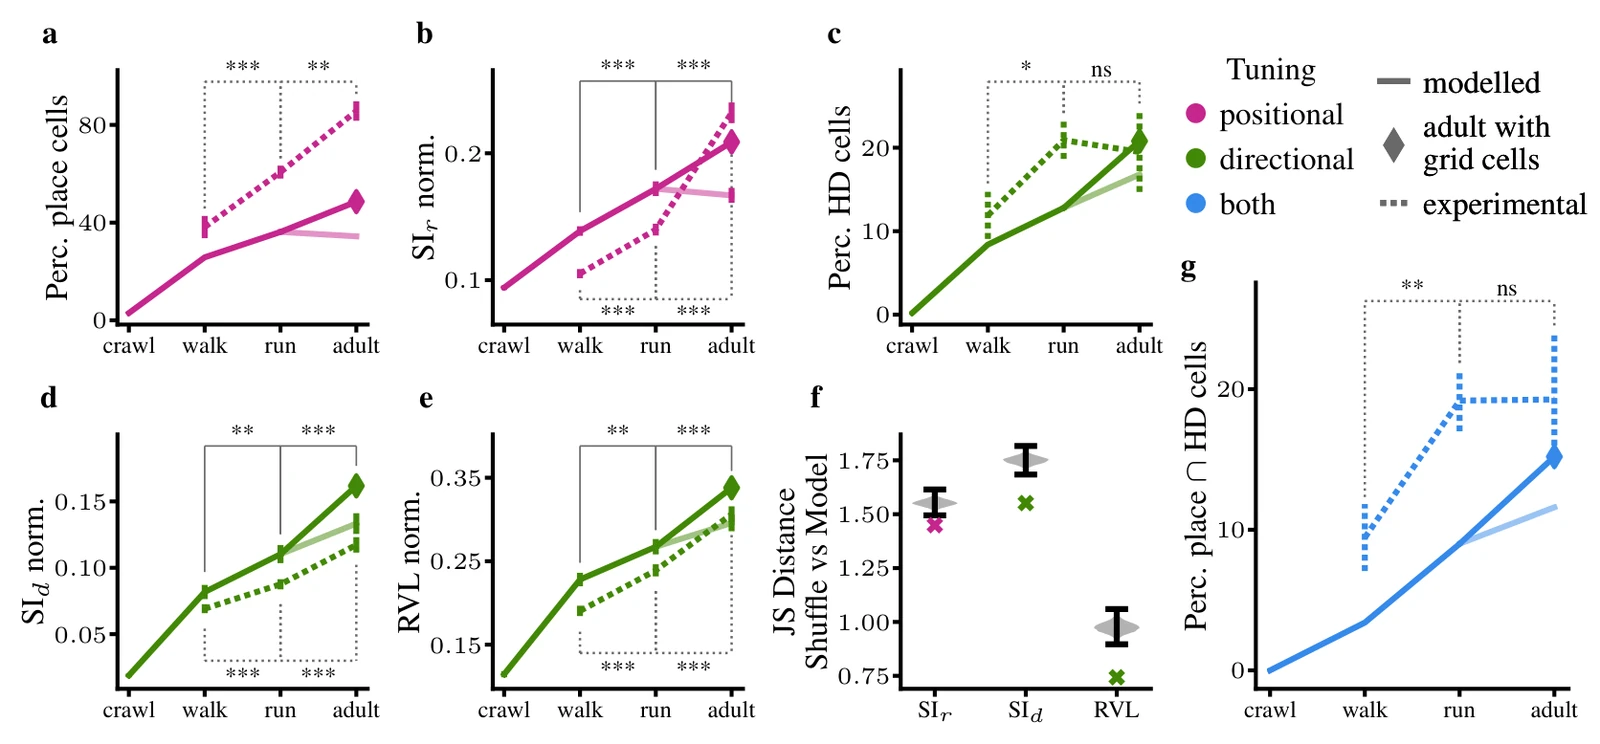
쥐에서 머리 방향 세포는 생후 15일 무렵 어른과 비슷해지고, 장소세포는 14일 무렵 처음 보인 뒤 몇 주에 걸쳐 다듬어지며, 격자세포는 20일 무렵에야 나타난다(1절). 이 순서가 왜 생기는지 설명하는 모델은 없었다. 이 논문은 같은 시기에 쥐가 기어다니다가 걷고 뛰게 된다는 데 주목했다. 이동 통계만 발달 순서대로 바꿔 주었더니 RNN 안에서 공간 성질이 차례로 자랐고, 그 흐름이 새끼 쥐 CA1 기록과 맞았다(3.1절, 그림 4).
가장 눈에 띄는 결과는 모델이 먼저 내놓은 예측이다. 모델에서는 발달이 진행될수록 방향 선택성이 순수한 머리 방향 세포보다 장소와 방향을 함께 띠는 세포에서 늘었다. 저자들이 기존 CA1 기록을 이 눈으로 다시 보니 장소와 방향을 함께 띠는 세포가 발달하면서 유의하게 늘어 있었다(3.2절, 그림 4g, JT 검정 p < 0.01). 발달 연구에서 따로 보고된 적 없는 현상이다.
어떻게 보였나
먼저 생후 11일에서 25일 사이 쥐들의 속도, 회전 속도, 칸 사이 이동 확률을 비교해 무리를 나눴다. 가우스 혼합 모형은 세 무리를 골랐고, 중앙 나이는 각각 13.5일, 16일, 20일이었다. 저자들은 이를 기어가기, 걷기, 달리기라 부르고 성체를 한 단계 더 두었다(2절, 그림 1c).
다음으로 단계마다 이 통계를 흉내 낸 궤적을 만들고, 가상 상자 안에서 쥐 눈높이의 흑백 파노라마 장면(32×16 화소, 가로 시야 240도)을 뽑았다(2.1절). 모델은 은닉 유닛 500개짜리 단층 RNN이다. 지금 장면과 속도, 회전 속도를 받아 1초 뒤 장면을 맞히도록 학습한다(3절, 식 1). 기어가기 단계에서 처음부터 학습하고, 이어서 걷기, 달리기, 성체 궤적으로 차례로 이어 학습했다.
핵심은 대조 실험이다. 속도가 빨라지면 장면이 한 번에 많이 바뀌어 예측이 어려워진다. 그렇다면 장면 변화 폭만 키워도 되지 않을까. 기어가기 궤적의 프레임 간격을 1초에서 3초까지 늘려 보았더니 장면 변화 폭은 성체 수준이 되었지만 공간 성질은 실제 발달을 따라가지 못했고, 모델 비교에서도 원래 모델 쪽이 데이터를 훨씬 잘 설명했다(3.3절, 그림 5, ΔBIC > 10). 발달 순서를 거꾸로 돌리면 공간 표상이 처음부터 바로 생겼고, 기어가기 궤적만 같은 양만큼 학습하면 거의 생기지 않았다(3.3절, 그림 A5).
(가) 발달 순서대로 학습한 모델이 마지막에 보는 움직임
(나) 대조: 기어가기 궤적의 프레임 간격만 늘림
눈여겨볼 점
격자세포는 모델 안에서 생기지 않는다. 성체 장소세포의 비율을 실험 수준까지 끌어올리려면 격자세포 25개의 신호를 은닉 상태에 90스텝마다 넣어 주어야 했고, 이 모델은 앞 단계를 이어받지 않고 처음부터 따로 학습했다(3절 식 2, 3.1절, 표 A3). 그러니 이 논문이 설명하는 범위는 장소세포와 방향 세포의 성숙까지다. 저자들도 격자세포가 경험보다 회로 자체의 힘으로 빠르게 자랄 가능성을 논의에서 짚는다(4절).
단계를 가르는 것은 속도 하나가 아니다. 표 A2에서 궤적을 만든 속도 매개변수는 걷기가 0.091 m/s, 달리기가 0.071 m/s로 달리기 쪽이 오히려 작다. 바뀌는 것은 속도, 속도 변화의 시간 척도, 회전의 폭, 벽에 붙는 정도의 묶음이다. 그래서 “움직임의 통계가 중요하다”는 결론은 탄탄하지만, 그중 무엇이 핵심인지는 이 실험으로 가려지지 않는다.
열린 질문
- 속도, 회전, 벽 따라가기 가운데 어느 성분이 장소와 방향을 함께 띠는 세포를 키우는지, 성분을 하나씩 떼어 발달 순서를 바꾸면 어떤 세포가 먼저 흔들리는지 알 수 있을까.
이해 확인
기어가기 궤적의 프레임 간격을 3초까지 늘린 대조 실험이 보여 준 것은?
- 장면 변화 폭을 성체 수준으로 키우면 발달 모델과 같은 공간 표상이 생긴다
- 프레임 간격을 늘리면 예측 과제가 너무 쉬워져 학습이 되지 않는다
- 장면 변화 폭이 성체 수준이 되어도 공간 성질은 실제 발달을 따라가지 못해, 움직임의 통계 자체가 중요하다
- 프레임 간격과 상관없이 격자세포 입력만 있으면 발달이 재현된다
간격을 늘린 모델은 장면 변화 폭이 성체와 비슷했지만 위치 해독 오차가 더 컸고 공간 구조도 약했으며, 모델 비교에서도 ΔBIC가 10을 넘게 뒤졌다. 격자세포 입력을 더해도 성체 모델에 못 미쳤다(3.3절, 그림 5). 장면이 얼마나 빨리 바뀌느냐보다 어떻게 움직이느냐가 공간 표상을 만든다는 뜻이다.
논문 정보
- 제목: From movement to cognitive maps: recurrent neural networks reveal how locomotor development shapes hippocampal spatial coding
- 저자: Marco P Abrate, Laurenz Muessig, Joshua P Bassett, Hui Min Tan, Francesca Cacucci, Thomas J Wills, Caswell Barry (University College London 외)
- 학회: ICLR 2026 구두 발표(Oral)
- 링크: OpenReview, bioRxiv