Nature (2026-09-23 온라인 게재, 접수 2026-01-25, 채택 2026-08-17)
사람 뼈를 만든 조절 변이 56만 개를 한꺼번에 시험했다
유전체학
한 줄 요약과 선정 근거
사람에게만 고정된 조절 부위 변이 561,410개를 사람 연골세포에서 한꺼번에 재고, 사람과 유인원의 유전체를 한 핵에 넣은 하이브리드 세포로 유전자 수준에서 다시 확인했다. 두 측정이 같은 곳을 가리켰다. 연골 바탕질의 당사슬인 글리코사미노글리칸(glycosaminoglycan, GAG)을 만드는 경로가 사람 계통에서 눌렸고, 실제로 사람 관절 연골의 GAG 양은 대형 유인원의 3분의 1 수준이었다.
Nature는 같은 날 해설 기사(News & Views)를 함께 실었다(Audrey M. Arner, Amanda J. Lea, Nature 658, 615-616). 사람의 뼈가 어떻게 지금 모양이 됐는지는 화석으로 오래 다뤄진 질문인데, 이 논문은 그 질문을 수십만 단위의 측정으로 옮겨 놓았다.
골랐던 이유는 측정 설계다. 변이를 양쪽 버전으로 만들어 같은 세포에서 비교하는 판, 그리고 두 종의 유전체를 한 핵에 넣어 환경 차이를 아예 없애는 판. 둘 다 ML에서 대조 실험을 짤 때 쓰는 생각과 겹친다. 자료와 코드, 심사 기록도 공개돼 있다.
배경지식 세 가지
- cis 조절 변이: 단백질을 바꾸는 변이보다, 어떤 유전자를 언제 어디서 얼마나 켤지 정하는 조절 부위의 변이가 가까운 종 사이의 형태 차이를 더 많이 만든다고 본다. 프로모터와 인핸서처럼 유전자 근처에 붙은 짧은 서열을 후보 cis 조절 요소(candidate cis-regulatory element, cCRE)라고 부른다. 서열 자체가 달라져 생기는 차이가 cis, 그 서열에 붙는 전사인자의 양이나 성질이 달라져 생기는 차이가 trans다.
- 대규모 병렬 리포터(massively parallel reporter assay, MPRA): 조절 부위 후보 수십만 개를 한 번에 시험한다. 각 후보 서열 뒤에 최소 프로모터와 짧은 바코드를 붙여 세포에 넣고, 바코드의 RNA를 DNA로 나눈 값으로 그 서열이 끌어낸 발현을 잰다. 같은 자리의 사람형과 조상형을 나란히 넣으면 한 글자의 효과가 두 값의 차이로 나온다.
- GAG와 아그레칸: GAG는 당이 길게 이어진 사슬이고, 연골에서는 아그레칸(aggrecan)이라는 단백질 줄기에 빗살처럼 매달린다. 음전하가 많아 물을 끌어당기므로 연골이 눌렸다가 되돌아온다. 연골 건조 무게의 15~30%를 차지해 콜라겐 다음으로 많다(본문).
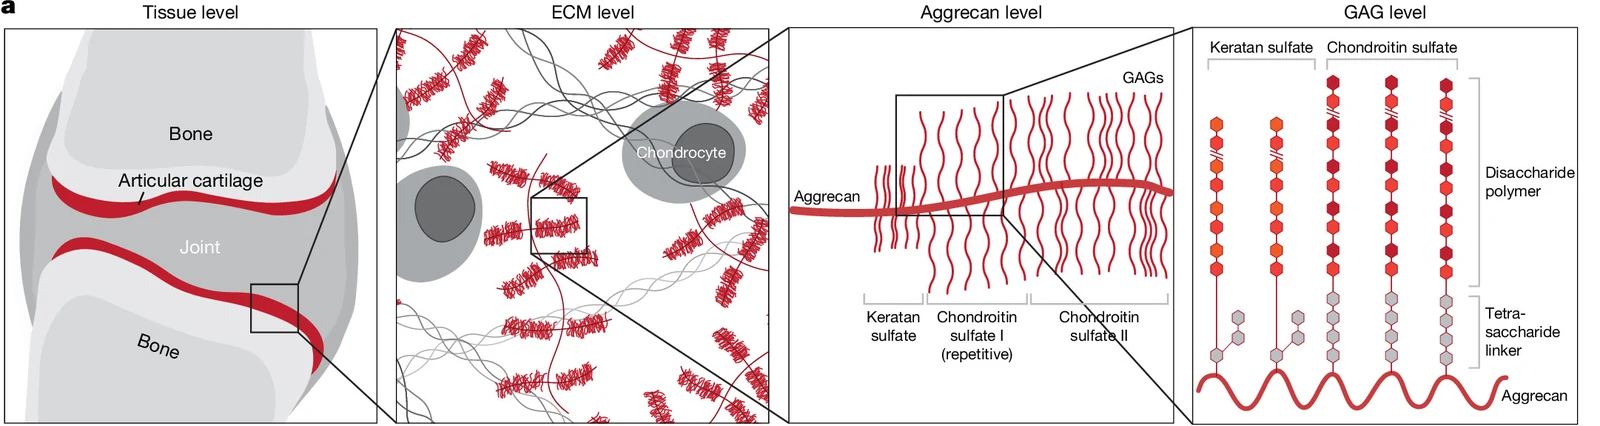
무엇을 발견했나
시험할 변이 목록 만들기. 연구진은 대형 유인원 139마리(보노보 10, 침팬지 59, 고릴라 43, 오랑우탄 27)의 유전체에서 사람 참조 서열과 다른 자리를 찾고, gnomAD의 사람 유전체 15,708개와 네안데르탈 유전체 3개, 데니소바 유전체 1개에서 변이가 전혀 없는 자리만 남겼다. 양쪽에서 고정된 변이 5,731,772개 가운데 ENCODE SCREEN이 조절 부위로 본 영역으로 좁혀 561,410개를 시험했고, 가까운 변이는 묶어 270염기 서열쌍 366,402개로 합성했다(본문, 방법 절).
(가) 서열 수준: 대규모 병렬 리포터
(나) 유전자 수준: 하이브리드 세포
두 측정판의 결과. 사람 연골세포에서 한쪽 대립 유전자라도 뚜렷한 발현을 끌어낸 서열쌍은 65,576개(17.90%)였고, 그 가운데 15,077개(23.0%)에서 사람형과 조상형의 활성이 달랐다(본문, 그림 1f, 1g). 두 대립 유전자의 활성은 전체로 보면 거의 같다(피어슨 r = 0.95). 활성 서열 넷 가운데 하나쯤에서만 한 글자 차이가 값을 움직였다는 뜻이다. 하이브리드 세포 쪽에서는 사람 계통에서 달라진 유전자 4,463개, 침팬지 계통에서 달라진 유전자 4,152개가 나왔다(본문, 보충 표 8).
한 경로로 모이는 신호. 차등 활성 cCRE에 이어진 유전자를 기능별로 모으자 GAG 대사가 가장 크게 튀어나왔다. 유전자 온톨로지에서 GAG 대사 과정이 2.2배(FDR 0.03), 골격 형태 형성이 1.8배(FDR 0.04) 많았고, 활성화와 억제를 함께 보는 IPA에서 가장 크게 내려간 과정도 GAG 대사였다(FDR 4.0 × 10⁻⁶)(본문, 그림 3b). 하이브리드 세포에서도 방향이 같았다. 사람 계통에서 발현이 달라진 GAG 유전자 21개 가운데 17개가 내려갔고, 내려간 쪽의 변화 폭이 올라간 쪽의 1.9배였다(P = 0.04)(본문, 그림 3c).
우연인지 보는 검정. 연구진은 GAG 경로를 KEGG 기준으로 넷으로 쪼갠 뒤, 각 경로에 이어진 cCRE들의 효과 크기 합이 무작위 기대보다 아래로 쏠렸는지 봤다. 콘드로이틴황산 합성, 헤파란황산 합성, GAG 분해에서 쏠림이 남았다(FDR 0.01, 본문). 같은 검정을 보충 표의 자료로 다시 계산한 것이 아래 그림이다. 세 경로는 무작위 분포의 왼쪽 꼬리로 벗어나고, 케라탄황산 합성은 오히려 오른쪽에 있다.
유전자 하나로 좁히면. 콘드로이틴황산 사슬을 늘리는 첫 단추인 CSGALNACT1에는 차등 활성 cCRE가 아홉 개 붙어 있고 그중 일곱 개가 발현을 낮추는 쪽이다(그림 3d). 가장 세게 내리는 자리는 첫 인트론 안이다. 사람 쪽 두 글자 변화가 연골세포의 전사인자 HES1과 BHLHE41의 결합 자리를 깨는 것으로 예측됐고 사람형의 활성이 조상형보다 34% 낮았다(FDR 2.1 × 10⁻⁹). 하이브리드 세포에서도 사람 대립 유전자가 침팬지보다 42%, 고릴라보다 34% 낮았다(본문).
반대로 늘어난 것. 아그레칸 유전자 ACAN의 엑손 12에는 57염기짜리 반복이 줄지어 있고, 반복 하나가 당사슬 부착점 두 개를 만든다. 사람 316개, 유인원 26개 하플로타입을 세어 보니 유인원 사이에서는 반복 수가 거의 변하지 않는데 사람에서만 평균 여섯 개, 곧 부착점 열두 개가 늘었다(P = 3.6 × 10⁻¹⁵, 그림 3e). 그것도 한 번에 늘지 않았다. 반복 수와 반복 안의 염기 조성이 다른 두 하플로그룹이 사람 집단에 함께 있다(그림 3f).
그래서 총량은 늘었을까. 사슬을 만드는 유전자는 눌리고 사슬을 매달 자리는 늘었으니, 둘을 더한 결과는 재 보기 전에는 알 수 없다. 연구진은 사람 42명과 대형 유인원 7마리의 관절 여덟 군데에서 연골 139조각을 떼어 황산화 GAG 양을 쟀다. 사람 쪽이 전체적으로 약 3분의 1이었고(P = 1.5 × 10⁻⁵), 관절마다 중앙값으로 2.6~4.0배 차이가 났다(본문, 그림 4). 팔꿈치처럼 사람이 덜 쓰는 관절에서도, 엉덩이처럼 더 쓰는 관절에서도 방향이 같았으니 하중 차이만으로는 설명되지 않는다.
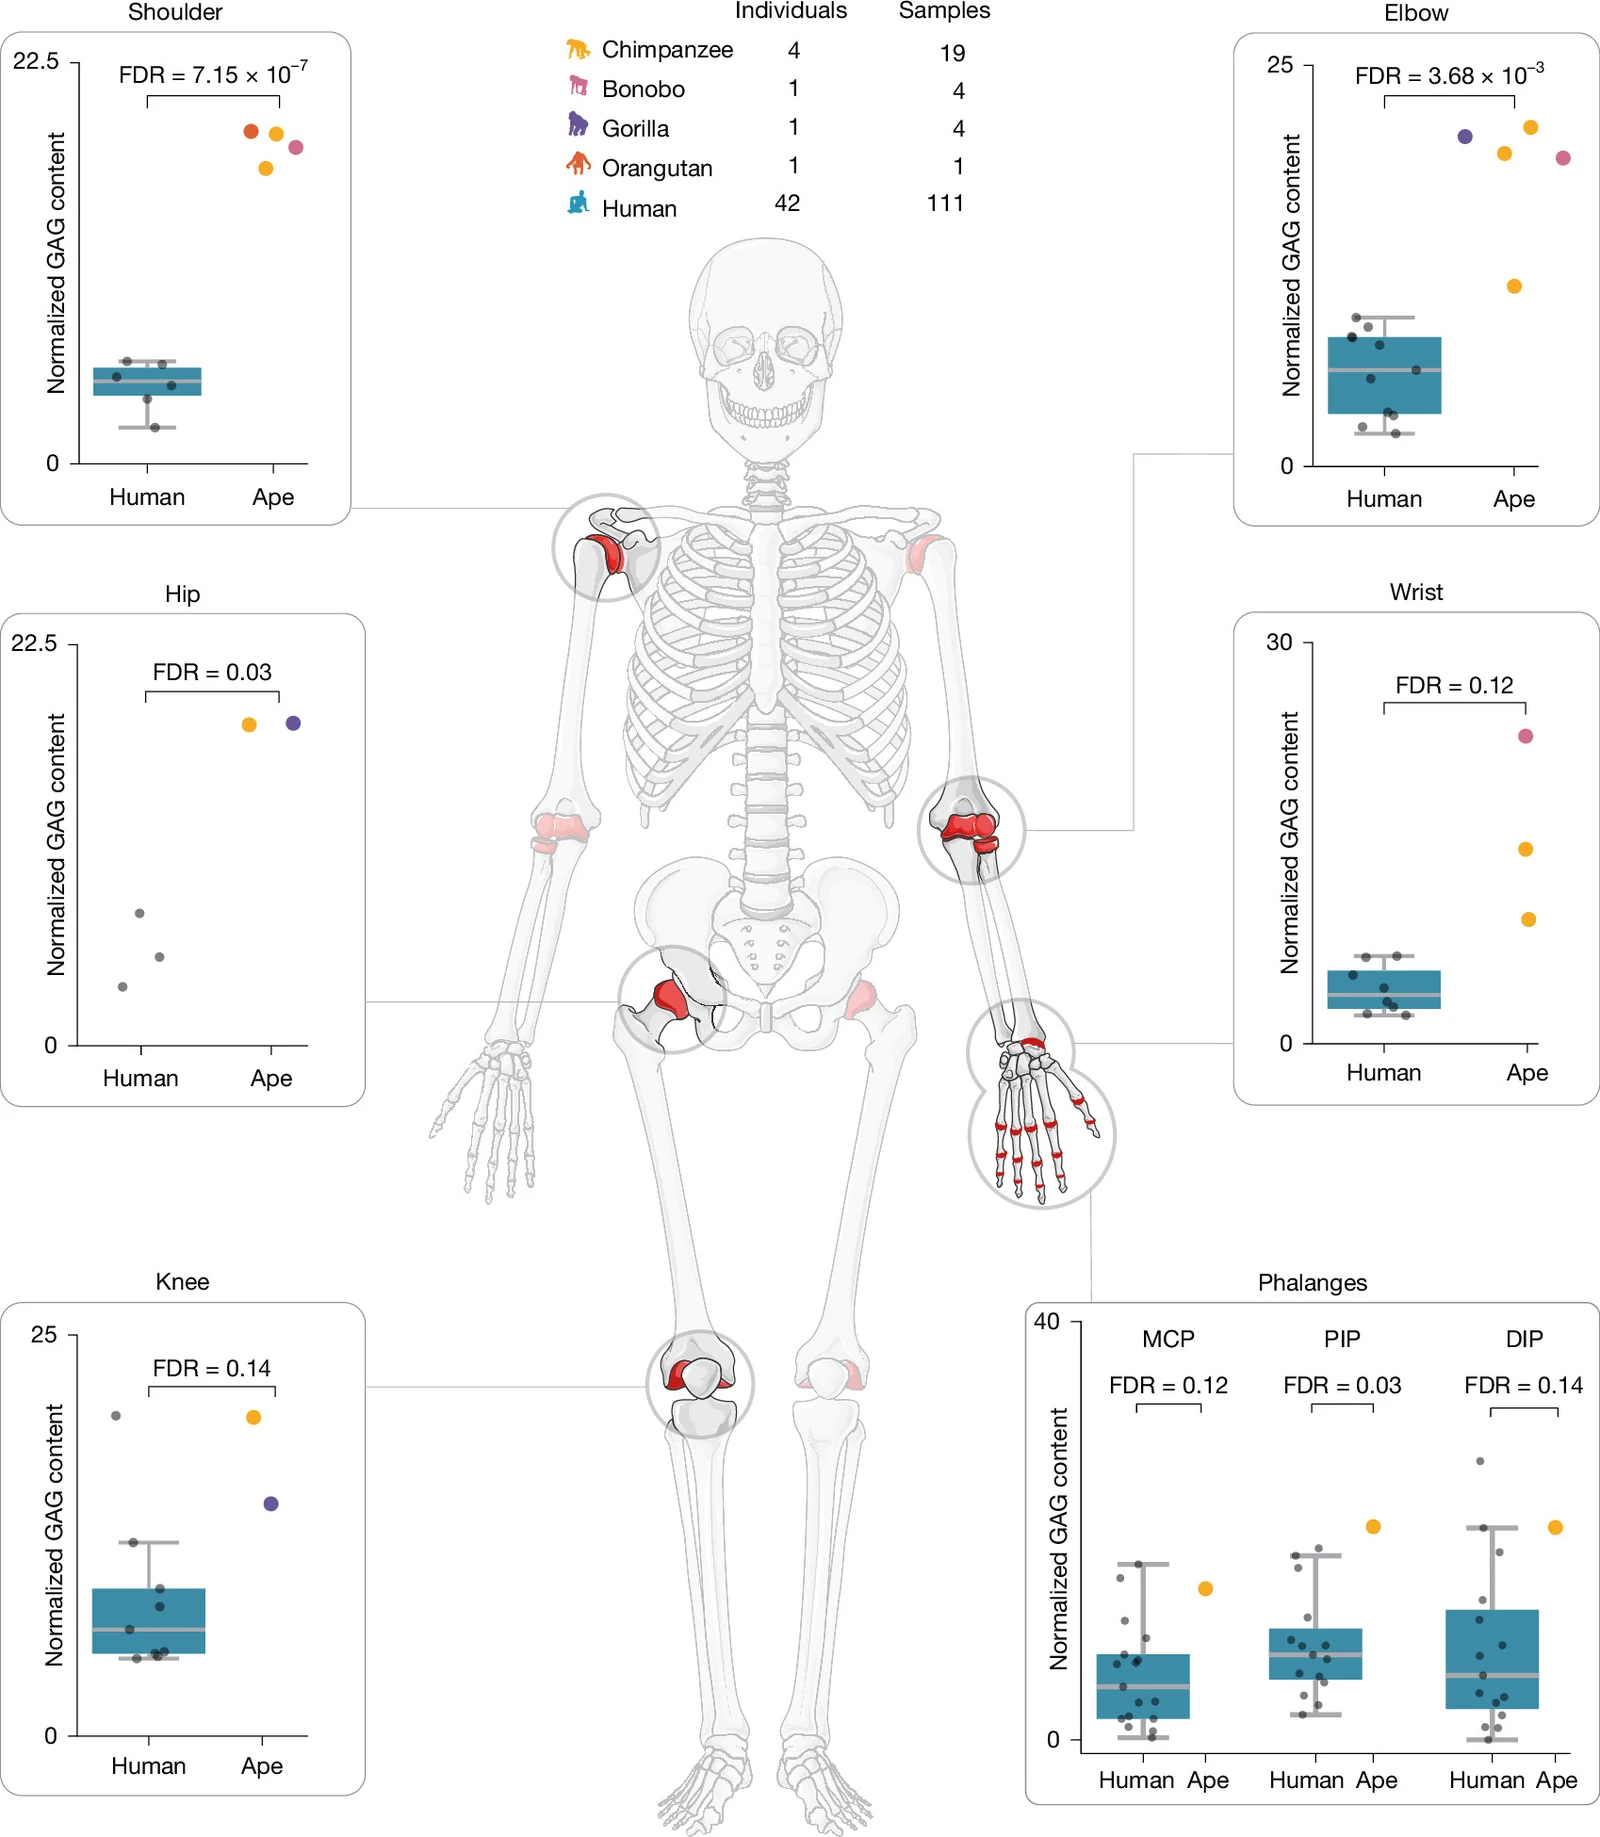
어떻게 했나
- 라이브러리와 품질 관리: 변이를 가운데 둔 270염기 조각을 사람형과 조상형 두 벌로 합성하고, 서열마다 중앙값 73개의 바코드를 붙여 바코드와 서열의 연결을 1억 1,247만 개까지 확인했다. 같은 cCRE의 다른 바코드들과 동떨어진 RNA 값을 내는 바코드는 삽입 위치 탓으로 보고 뺐다(반복마다 평균 3.58%, 방법 절). 연골세포의 열린 염색질(ATAC-seq)과 H3K27ac도 따로 재서 어느 cCRE가 세포 안에서 실제로 열려 있는지 확인했다.
- 하이브리드 세포: 사람과 고릴라의 역분화 줄기세포를 융합해 사배체 세포주 두 개를 만들고, 기존의 사람과 침팬지 융합 세포와 함께 팔다리 뼈연골 전구세포로 분화시켰다. 읽기를 어느 쪽 유전체에 줄지 정할 때 생기는 매핑 편향은 서열을 바꿔 치기로 다시 맞춰 걸렀고, 한쪽으로 치우친 염색체 구간은 이수성으로 보고 뺐다(방법 절).
- 연골 측정: 염료로 황산화 GAG를 재고 DNA 양으로 나눴다. 무게로 나누던 기존 방식은 GAG가 많을수록 물을 더 머금어 무게도 늘기 때문에 순환 논리가 된다고 보고 바꿨다(심사 기록). 나이와 성별은 GAG 양과 상관이 없었다(확장 데이터 그림 10).
분야에서의 의미
- 사람에게 고정된 조절 변이의 기능을 이 규모로 훑은 자료가 없었다. 라이브러리가 사람 유전체에서 인핸서로 추정되는 영역의 약 40%를 덮으므로 골격과 상관없는 질문에도 쓸 수 있다(토의).
- 골격 진화의 그림이 바뀐다. 소수의 큰 변이가 아니라 수천 개 요소에 퍼진 작은 변화라는 쪽이다. 같은 해의 사람과 침팬지 골격 조절 요소 비교(Okamoto 외, Genome Biology and Evolution 18(5), 2026)도 같은 방향을 가리킨다.
- 퇴행성 관절 질환을 진화의 부채로 보는 설명에 숫자가 붙었다. 환자에서 보고된 GAG 감소가 대조군 대비 25~38%인데 사람과 유인원의 차이는 62%다(토의). 저자들은 사람이 태어날 때부터 연골이 닳기 쉬운 쪽에 서 있을 가능성을 말한다.
ML 연구자를 위한 인사이트
1. 쌍으로 통제된 섭동 자료 56만 건 (새 문제와 데이터, 직접 적용)
서열에서 발현을 예측하는 모델이 요즘 많이 나오지만, 평가는 대개 자연 변이와 발현량의 상관으로 한다. 이 자료는 다르다. 한 글자만 다른 두 서열의 활성을 같은 세포, 같은 실험에서 나란히 재서 효과의 방향과 크기가 쌍으로 붙어 있고, 대상이 사람 계통에서 고정된 변이라 종 사이 형질이라는 바깥 기준도 함께 있다.
난이도는 분포에 드러난다. 차등 활성으로 판정된 15,077개의 효과 크기는 중앙값이 자연로그로 0.29, 곧 1.3배 남짓이다(보충 표 4). 큰 스위치를 찾는 문제가 아니라 작은 편차의 방향을 맞히는 문제다. 바코드가 적게 붙은 서열은 측정 자체의 분산도 크니, 평가 기준을 세울 때 모델의 오차와 측정의 오차를 갈라 놓아야 한다.
2. 교란을 보정하지 말고 설계로 없앤다 (방법론 교훈, 영감 수준)
하이브리드 세포가 하는 일은 통계적 보정이 아니라 설계다. 두 유전체가 한 핵에 있으니 전사인자도, 배양 조건도, 실험 배치도 둘에게 똑같이 적용된다. 남는 차이는 서열에서 온다. 종을 따로 키워 비교할 때 늘 따라오던 교란이 빼기 전에 이미 사라진다.
물론 공짜는 아니다. MPRA에서는 조상형 서열을 사람 세포 안에서 쟀으니 조상 세포의 전사인자 환경과 다를 수 있고, 하이브리드는 사배체라 배수성 자체의 효과가 섞일 수 있다. 저자들은 이 가정을 따로 점검했다. 사람과 침팬지의 전사인자 유전자 발현은 하이브리드 세포에서 r = 0.94로 높았고, 전에 뼈모세포에서 쟀던 대조 서열을 연골세포에서 다시 재니 89.52%가 같은 방향이었다(방법 절). 블로그의 해석으로는 설계가 없앤 교란을 말하는 데서 그치지 않고 남은 가정까지 숫자로 점검해 둔 점이 이 논문을 설득력 있게 만든다.
3. 값싼 대리 측정이 최종 측정과 어긋날 때 (방법론 교훈, 직접 적용)
처음 투고한 원고에는 두 측정판을 잇는 분석이 있었다. 하이브리드에서 사람 대립 유전자의 발현이 올라간 유전자가 MPRA에서도 발현을 올리는 cCRE를 많이 끼고 있는지 본 것이다. 심사위원 둘이 같은 지점을 짚었다. 겹침이 약한데 유전자당 차등 cCRE 다섯 개 이상이라는 조건까지 걸었으니 예측력이 약한 셈 아니냐는 지적이었다. 저자들은 세 가지 이유를 들었다. 측정한 세포가 연골세포와 뼈연골 전구세포로 서로 다르고, 하이브리드의 발현 차이에는 MPRA가 다루지 않는 삽입과 결손, 구조 변이까지 섞이며, 무엇보다 여러 조절 요소의 효과가 유전자 수준에서 어떻게 합쳐지는지가 아직 풀리지 않았다고 답했다. 그리고 이 분석을 공개본에서 뺐다(심사 기록).
ML 쪽 말로 옮기면 값싼 대리 지표와 최종 지표가 어긋나는 이야기다. 격리된 짧은 서열의 활성은 유전자 발현량과 같은 양이 아니다. 둘 사이에는 요소를 모으는 함수가 있고, 그 함수가 덧셈인지 곱셈인지 포화가 있는지는 아직 합의가 없다.
4. 신호가 개별 항목이 아니라 집합에서만 보일 때 (방법론 교훈, 직접 적용)
차등 활성 cCRE 하나하나는 효과가 작고 어느 유전자에 붙는지도 확률적이다. 신호는 경로 단위로 합쳐야 보인다. 그래서 검정의 단위를 유전자도 변이도 아닌 경로로 올리고, 귀무 분포는 연결 구조를 유지한 채 효과 크기만 섞어 만든다.
여기에는 조심할 구석이 둘 있다. 먼저 고르고 나서 검정하는 순서다. 여러 데이터베이스에서 가장 많이 내려간 용어를 찾고 그 용어에만 검정을 돌리면, 찾는 과정에서 쓴 선택지의 수가 p값에 들어가지 않는다. 심사위원 한 명이 이 점을 물었고, 저자들은 앞선 농축 분석의 p값은 이미 보정돼 있었다고 답하면서 경로 넷에 대한 보정이 빠졌음을 인정하고 다시 계산했다(심사 기록). 다음은 집합 안 항목들의 의존성이다. 같은 유전자에 여러 cCRE가 붙고 유전자들끼리도 한 경로 안에서 함께 움직이므로, 항목을 독립으로 보고 섞으면 귀무 분포가 실제보다 좁아진다. 유전자 집합 검정에서 오래 다뤄 온 문제이고, 이 검정도 같은 질문을 받을 자리에 있다.
한계와 남은 질문
- 유인원 표본이 적다. GAG 양 비교의 유인원 쪽은 7마리뿐이고, 관절에 따라 한 마리에서 다섯 마리 사이다. 그림 4의 여덟 관절 가운데 FDR이 0.05 아래인 곳은 넷이다. 첫 투고 때는 침팬지 한 마리였고, 심사위원 둘이 같은 지적을 하자 저자들이 네 종 일곱 마리, 관절 여덟 군데로 넓혔다(심사 기록). 결론의 방향은 넓힌 뒤에도 유지됐다.
- 나이와 보존 상태가 맞지 않는다. 사람 표본은 51세에서 97세, 유인원은 20세에서 60세다. 보정해도 차이가 남았다고 하지만 두 집단의 사망 원인과 보관 방식은 같지 않다.
- MPRA가 놓치는 것. 270염기 조각만 보므로 더 긴 맥락이 필요한 조절은 잡히지 않고, 무작위 위치에 끼워 넣으므로 원래 자리의 염색질 상태도 반영되지 않는다. 저자들은 이런 한계가 대체로 거짓 음성을 만든다고 본다(보충 정보).
- 세포 한 종류, 발생 한 시기. 연골세포와 뼈연골 전구세포에서만 쟀다. 뼈를 만드는 과정은 시기마다 다른 유전자를 쓰므로 여기서 조용했던 변이가 다른 시기에 일할 수 있다.
- 적응인지 느슨해짐인지. 발현이 내려간 쪽으로 쏠리는 일은 음성 선택이 느슨해졌을 때도 나타난다. 다만 단백질 수준에서 GAG 유전자의 보존 정도는 다른 유전자와 다르지 않아(dN/dS 비교에서 P = 0.635) 느슨해졌다는 설명과 어긋난다. 아그레칸의 부착점이 왜 두 번에 걸쳐 늘었는지도 아직 관찰 수준이다.
열린 질문
- 서열에서 발현을 예측하는 모델은 이렇게 작고 고정된 변이의 방향을 어디까지 맞힐 수 있을까. 종 사이 차이라는 바깥 기준이 붙은 이 자료가 그 평가에 쓰일까.
- 한 유전자에 붙은 조절 요소 여러 개의 효과는 어떤 함수로 합쳐질까. 짧은 서열에서 잰 값과 원래 자리의 값 사이를 좁히려면 무엇을 더 재야 할까.
- 연골의 당사슬이 줄어든 것이 형태를 바꾸려는 적응인지, 쓸모가 줄어 제약이 풀린 결과인지 가르려면 어떤 증거가 필요할까.
이해 확인
1. 하이브리드 세포가 cis 효과와 trans 효과를 가를 수 있는 까닭은?
- 두 종의 세포를 따로 키우면서 배지 조건을 똑같이 맞추기 때문이다
- 사람 유전체만 남기고 유인원 유전체를 제거해 비교 대상을 단순하게 만들기 때문이다
- 두 종의 유전체가 한 핵 안에서 같은 전사인자를 쓰므로, 두 대립 유전자의 발현 차이는 서열 자체에서 오기 때문이다
- 융합한 세포가 조상 상태를 그대로 되살리기 때문이다
융합 세포에서는 두 유전체가 같은 핵, 같은 전사인자 환경에 놓인다. 그래서 대립 유전자별 발현 차이에 trans 요인이 끼어들 자리가 없고 cis 차이만 남는다(그림 2a).
2. 아그레칸의 당사슬 부착점은 사람에서 늘었는데 연구진이 연골을 직접 뜯어 재야 했던 까닭은?
- 유전자 발현 측정이 실패해 다른 증거가 필요했기 때문이다
- 사슬을 만드는 유전자는 눌리고 매달 자리는 늘었으니, 둘을 합친 결과가 어느 쪽인지 측정하기 전에는 알 수 없기 때문이다
- 반복 수가 사람과 유인원에서 같아 유전체 비교로는 차이가 보이지 않았기 때문이다
- MPRA가 단백질 양을 직접 재는 방법이기 때문이다
합성 경로의 하향 조절과 부착점 증가는 서로 반대 방향이다. 실제 조직에서 황산화 GAG를 재 보니 사람 쪽이 약 3분의 1이었고 관절마다 중앙값으로 2.6~4.0배 차이가 났다(본문, 그림 4). 저자들은 부착점이 늘어난 것이 줄어든 사슬에 대한 반응일 수 있다고 본다.
3. 경로 단위 선택 검정에서 심사위원이 짚은 통계 문제는?
- 귀무 분포를 만들 때 cCRE와 유전자의 연결을 끊어 버린 점
- 효과 크기 대신 개수만 셌다는 점
- 차등 활성 판정의 FDR 기준이 너무 느슨하다는 점
- 가장 크게 내려간 용어를 고른 뒤 그 경로들만 검정하면서 경로 넷에 대한 다중 비교 보정을 하지 않은 점
심사위원은 용어를 찾는 과정에서 쓴 선택지의 수가 p값에 들어가지 않는다는 점을 물었다. 저자들은 농축 분석의 p값은 이미 보정돼 있었다고 답하면서 경로 넷에 대한 보정이 빠진 것은 인정하고 다시 계산했다. 세 경로가 FDR 0.01로 남았다(심사 기록, 본문).
논문 정보
- 논문: Yizhi Yan 외 34명 (교신 저자 Fumitaka Inoue, David Gokhman), “The gene-regulatory evolution of the human skeleton”, Nature (2026년 9월 23일 온라인 게재). doi:10.1038/s41586-026-11053-x
- 해설 기사: Audrey M. Arner, Amanda J. Lea, “The human skeleton’s unique adaptations relied on gene regulatory changes”, Nature 658(8136), 615-616 (2026). doi:10.1038/d41586-026-02775-z
- 데이터: MPRA와 하이브리드 세포 자료 NCBI GEO GSE316891, GSE316892, 연골세포 ATAC-seq와 CUT&Tag DDBJ PRJDB40123
- 코드: 분석 전체