Science (2026-10-08 온라인 게재)
A DNA Typewriter records the cell lineage history of a mouse, from zygote to late organogenesis
DNA에 한 글자씩 적어 생쥐 배아 128만 세포의 족보를 그렸다
발생생물학
한 줄 요약과 선정 근거
생쥐 수정란에 유전체를 고쳐 쓰는 기록 장치를 넣어, 세포가 갈라지는 동안 유전체 안의 테이프에 기호가 차례로 쌓이게 했다. 수정 뒤 13.5일째 배아 하나에서 핵을 뽑아 세포 128만 개의 전사체와 테이프 기록을 함께 읽고, 수정란을 뿌리로 삼아 가지마다 날짜가 붙은 계통수를 세웠다. 포유류에서 세포 하나하나까지 내려가는 촘촘한 족보는 그동안 손이 닿지 않던 목표였다.
논문이 나온 날 워싱턴대 의대가 보도자료를 냈고 과학 매체들이 받아 썼다. 같은 달 Cell에는 다른 기록기로 배아 16마리를 쫓은 논문이 실렸는데(Colgan 외, 2026), HHMI는 두 연구를 묶어 소개했다. 한쪽은 배아 하나를 깊이 파고, 다른 쪽은 여러 배아로 반복을 확인했다.
고른 이유는 측정 설계다. 기록의 순서를 추론으로 복원하지 않고 매체가 보장하게 만들었고, 같은 세포에서 족보와 상태를 한꺼번에 읽었다. 결과물도 숫자 몇 개가 아니라 잎이 128만 개인 나무 자체이고, 나무 파일과 코드, 원자료가 공개돼 있다.
배경지식 세 가지
- 세포 계통(cell lineage)과 조절형 발생: 수정란 하나가 갈라져 몸이 되는 동안 어느 세포가 어느 세포에서 나왔는지 적은 족보를 세포 계통이라고 한다. 예쁜꼬마선충은 몸이 투명하고 분열 차례가 개체마다 같아서 현미경으로 끝까지 그릴 수 있었다(Sulston 외, 1983). 생쥐와 사람은 다르다. 몸이 불투명하고 세포가 수십억 개이며, 세포의 운명이 혈통보다 주변 신호에 더 끌리고 분열 차례도 개체마다 다르다. 그래서 변덕스러운 계통에서 어떻게 매번 같은 몸이 나오는지가 오래된 질문으로 남았다.
- 분자 기록기(molecular recorder)와 프라임 편집: 유전체는 분열할 때마다 복제되므로 거기에 표시를 남기면 후손이 모두 물려받는다. 초기 방식은 Cas9로 이중가닥을 끊고 수선 과정에서 생기는 흉터를 읽었는데, 끊는 자리가 몰려 있으면 결손이 생겨 옆에 적어 둔 기록까지 날아간다. 프라임 편집(prime editing)은 가닥을 끊지 않고 짧은 염기를 끼워 넣는다. DNA 타자기는 14염기 단위를 여섯 칸 이어 붙인 테이프에 이 삽입을 쓴다.
- 계통수 추론: 세포마다 읽어 낸 기록을 견주어 거리를 매기고 가까운 것부터 묶어 나무를 만든다(이웃 결합, neighbor joining). 가지 길이를 시간으로 바꾸려면 기록이 일정한 속도로 쌓인다는 분자시계 가정이 필요하고, 각 갈림이 믿을 만한지는 그 가지를 받치는 독립 증거의 수로 잰다. 계통학에서는 자료를 다시 뽑아 나무를 여러 번 세우는 부트스트랩을 쓰는데, 잎이 100만 개면 그럴 수가 없다.
(가) 순차 기록
(나) 두 세포를 견주면
무엇을 발견했나
기록이 실제로 쌓였다. 프라임 편집 효소와 가이드 RNA, 테이프를 수정란에 직접 주사했더니 배아 열 마리 가운데 세 마리에 테이프가 들어갔고, 가장 잘 된 3번 배아에는 서로 다른 자리에 테이프가 11개 박혔다. 테이프마다 여섯 칸이니 세포 한 개에 칸이 66개다. 실제로 쓰인 기호는 여덟 가지였고, 11개 테이프를 모두 읽은 세포 4,371개에서 평균 55칸, 곧 83%가 채워져 있었다(본문, 그림 2C).
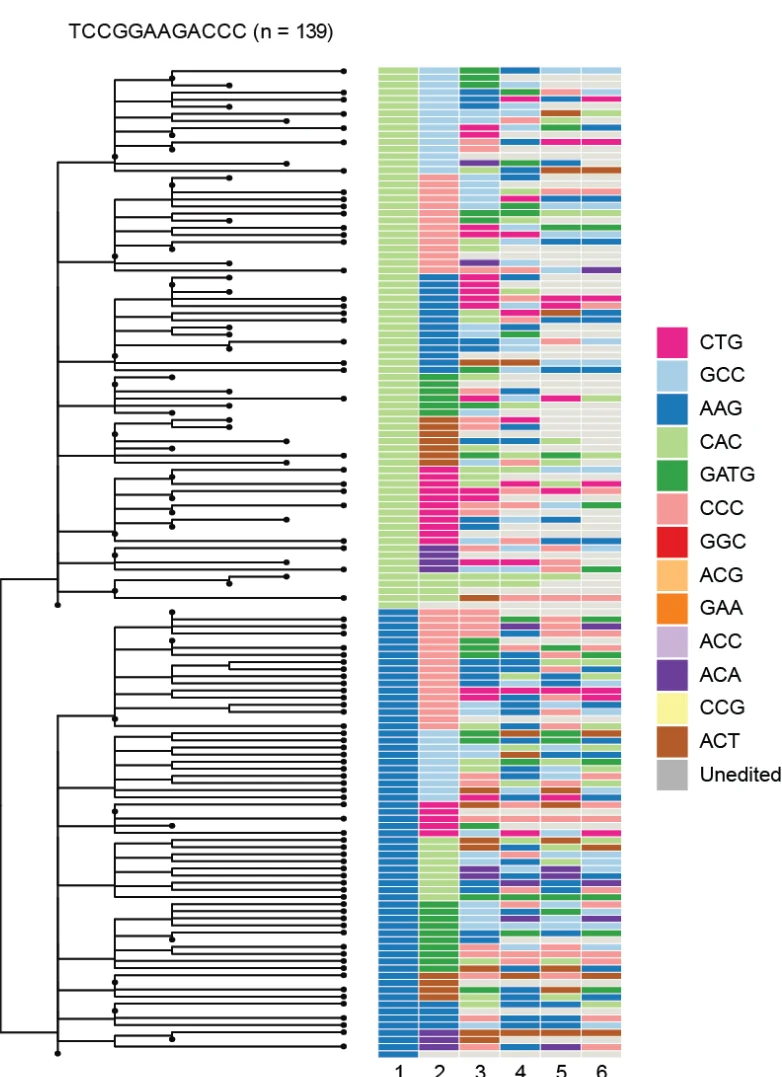
첫 분열이 도장처럼 찍혔다. 수정란이 둘로 갈라지던 무렵 편집이 몰아쳐서, 테이프 아홉 개에서 1번 칸의 기호가 두 가지로 깨끗하게 갈렸다. 두 할구를 A와 B로 부르면 A에는 23개, B에는 19개의 편집이 찍혔다(본문, 표 S2). 이 도장 덕분에 세포 1,543,184개, 곧 99.0%를 어느 할구의 후손인지 가를 수 있었다. A 쪽이 889,849개(57.1%), B 쪽이 653,335개(41.9%)로 수는 기울었지만 두 쪽이 만들어 낸 세포 유형의 비율은 거의 같았다(스피어만 ρ = 0.99, 그림 2E). 어느 할구에서 왔느냐가 운명을 가르지는 않았고, 배아 한 마리 안에 반복 분석이 둘 생겼다.
잎이 128만 개인 나무. 테이프를 일곱 개 이상 읽은 세포 655,701개로 뼈대 나무를 세우고, 네 개에서 여섯 개를 읽은 세포 625,440개를 가장 가까운 친척 옆에 붙였다. 최종 나무는 잎이 1,281,141개이고 잎마다 전사체와 138가지 세포 유형 가운데 하나가 달려 있다(본문). E13.5 배아 전체의 10% 남짓이지만 안쪽은 훨씬 촘촘해서, E7.5로 날짜가 매겨진 계통 13,181개마다 평균 97개의 후손이 표본에 들어 있다. 테이프 다섯 개만 읽어도 세포 353,681개 가운데 다른 세포와 똑같은 기록을 가진 세포는 15%뿐이었다(본문).
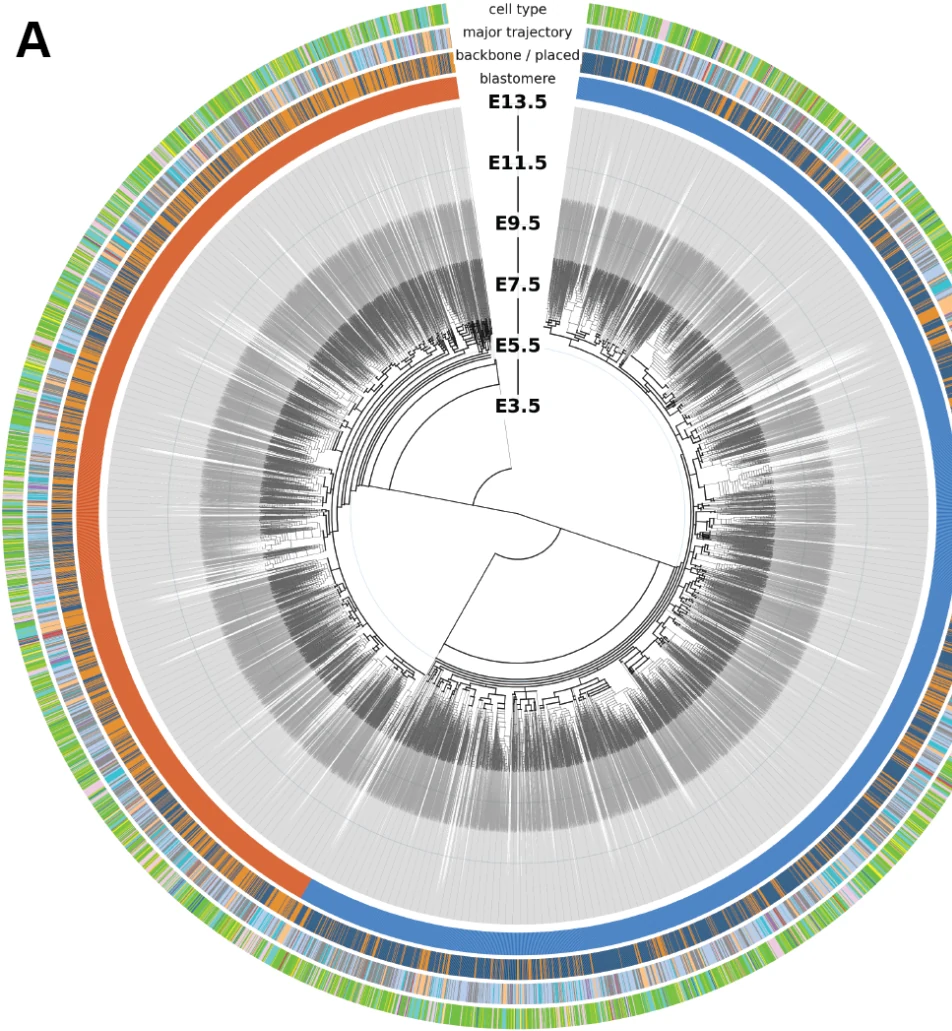
계통은 운명을 얼마나 말해 주나. 나무에서 바로 이웃한 잎끼리 보면 51%가 같은 세포 유형이었고, 잎 이름표를 섞은 귀무 분포보다 9.4배 높았다(본문). 폐 전구세포처럼 좁은 자리에서 뭉쳐 불어나는 유형은 145배까지 올라갔다. 더 오래된 관계를 보려고 시각 t를 E7.0부터 E13.25까지 0.25일씩 옮기며 그때 살아 있던 계통의 후손 안에서 어떤 세포 유형 짝이 함께 나오는지 셌고, 둘이 유의하게 함께 나오는 가장 이른 시각을 그 짝의 결합 깊이로 정의했다. 날짜가 붙은 짝이 129개이고, 그 가운데 122개(95%)는 유의한 구간이 시간축에서 끊기지 않았다(본문, 그림 5C). 이 깊이로 묶으면 조혈, 신경외배엽, 신경능선, 중배엽, 내배엽, 표면외배엽이 각각 덩어리로 나온다. 나무를 세울 때 전사체를 전혀 쓰지 않았는데도 그렇다.
초반에 승부가 갈린다. E7.0에 살아 있던 계통 3,849개를 시조로 삼고 각자가 E13.5에 남긴 후손 수를 세면, 평균은 333개인데 분포가 심하게 기울어 있다. 가장 큰 170개가 전체 잎의 절반을 차지했고, 순수 출생 과정을 가정한 귀무 모형에서는 720개가 필요했다(본문, 그림 4B). 불평등을 재는 지니 계수는 0.80으로 귀무 모형의 0.50을 크게 넘었고, 이 기울기는 E9.0 무렵 평평해졌다(그림 4D). 시조 20개가 배아 전체의 5%만 만들었는데 후각 감각 뉴런 4,178개 가운데 51%를 만든 식이다(본문).
어떻게 했나
- 넣기와 꺼내기: 테이프는 Pol-III가 읽는 원형 RNA로 다시 설계했다. 분화한 조직은 세포 단위로 흩어지지 않아 핵을 뽑아 썼는데, 핵에는 mRNA가 적어 기록 회수가 늘 문제였고 원형 RNA가 선형보다 잘 잡힌다는 점을 노렸다. 핵 약 1,000만 개에서 품질 검사를 통과한 전사체 1,584,848개를 얻었고, 세포와 테이프의 조합 가운데 54%에서 기록을 읽었다(본문).
- 나무 세우기와 날짜 매기기: 거리는 DNA 타자기 전용 척도를 쓰고, 뼈대 나무는 이웃 결합으로 세운 뒤 최소제곱 방식으로 날짜를 매겼다. 뿌리를 E1.5, 잎을 E13.5로 묶고 가지 길이의 하한을 2시간으로 뒀으며, 어느 시점의 조상 계통 수가 그때 배아의 세포 수를 넘지 못하게 상한을 걸었다. 상한 없이 매기면 E6.5에 조상 계통이 97,566개로 나오는데 그때 배아의 상배엽은 세포가 660개 남짓이다. 상한을 걸면 최소제곱 목적함수가 1.8%만 나빠지고 초기 분기가 나흘쯤 뒤로 밀린다(본문, 그림 S7).
- 믿을 만한지 재기: 부트스트랩이 불가능하므로 각 갈림을 받치는 독립 편집의 수를 세는 간단한 지지도를 만들었다. 내부 가지의 78%(A)와 80%(B)가 편집 하나 이상으로 받쳐졌고, 2개 이상인 가지는 64%와 68%였다(본문). 테이프 하나를 빼고 세운 나무가 뺀 테이프의 거리를 얼마나 되살리는지도 따로 확인했다.
- 기록 속도: 편집 속도는 평평하지 않았다. 2세포기에 20건쯤이 몰린 뒤 착상 무렵까지 거의 멈췄다가 E6 언저리에 되살아나 하루 9건까지 올랐고, 테이프가 차면서 다시 떨어졌다(본문, 그림 2J).
분야에서의 의미
- 파괴적 표본 추출의 한계가 풀린다. 시각마다 배아를 잡아 단일세포 전사체를 재는 방식은 어떤 상태가 언제 나타나는지는 알려 주지만 어느 세포가 어느 세포의 후손인지는 지운다. 나무가 생기면 상태의 시간표와 혈통이 한자리에 놓인다.
- 저자들은 이 나무를 참조 세포 나무(reference cell tree)의 첫 조각으로 본다(Domcke와 Shendure, 2023). 개체마다 계통이 다르니 특정 나무가 아니라 여러 개체에서 되풀이되는 규칙만 뜻이 있다. 같은 달 Cell에 실린 PEtracer 논문이 배아 16마리에서 세포 140만 개 넘게 추적해 분열의 약 75%를 복원했다고 보고했으니(Colgan 외, 2026), 되풀이되는 규칙을 가리기 시작할 자료가 생겼다.
- 측정 설계가 바뀌면 질문도 바뀐다. 클론 지배는 전부터 알려져 있었지만, 표시를 한 시점에 찍고 다른 시점에 읽는 방식으로는 크기만 잴 수 있고 언제 생겼는지는 물을 수 없었다. 날짜가 붙은 나무에서는 불평등이 언제 생겨 언제 멈추는지가 그래프 한 장이 된다. 조절 변이 수십만 개를 한꺼번에 재서 사람 골격의 진화를 다시 본 최근 Nature 논문 해설과 같은 결이다.
ML 연구자를 위한 인사이트
1. 순서를 알고리즘이 아니라 매체에 맡긴다 (원리 차용, 영감 수준)
흩어진 자리에 표시를 남기는 기록기는 두 가지를 잃는다. 먼저 순서다. 어느 표시가 먼저 생겼는지 알 수 없어 추론으로 복원해야 한다. 다음은 시간 해상도로, 빈 자리가 줄수록 새 표시가 생길 확률이 떨어진다. 위의 계산 그래프가 그 손실을 보여 준다. 칸 66개에 같은 속도로 적으면 기록 속도가 하루 8.8건에서 1.5건으로 여섯 배 느려지는데, 활성 칸을 늘 하나로 묶어 두면 4.1건으로 평평하다. 같은 용량, 같은 총량인데 시간 해상도만 달라진다.
쓰기 가능한 자리를 한 칸으로 묶고 쓴 뒤에 다음 칸을 여는 구조는 추가 전용 로그(append-only log)와 똑같다. 순서를 메타데이터로 따로 적어 맞추느냐, 쓰기 구조 자체가 순서를 보장하게 하느냐의 선택이다. 다만 매체가 순서를 보장해도 속도까지 지켜 주지는 않았다. 2세포기의 폭발과 그 뒤의 정체는 설계가 아니라 세포 안 사정에서 왔다.
2. 잎이 128만 개이고 내부가 비어 있는 나무 (새 문제와 데이터, 직접 적용)
공개된 자료는 흔치 않은 모양이다. 잎마다 전사체와 세포 유형이 붙어 있고, 내부 노드 1,109,894개는 상태가 비어 있으며, 가지마다 날짜와 지지도가 달려 있다. 여기서 바로 나오는 과제가 여럿이다. 최대우도나 베이즈 계통 추론을 100만 규모로 올리는 일, 결측이 절반에 가까운 관측에서 나무를 세우는 일, 잎의 상태에서 조상의 상태를 메우는 일, 두 나무에서 되풀이되는 구조를 정의하고 재는 일.
난이도는 숫자에 드러난다. 뒤에 붙인 세포들은 대부분 자기 닻과 모든 칸에서 기록이 같아 위상 정보를 거의 더하지 못하므로(본문, 그림 S10), 결측을 어떻게 다루느냐가 나무의 아래쪽 모양을 좌우한다.
3. 다시 뽑을 수 없을 때 신뢰도를 어떻게 재나 (방법론 교훈, 직접 적용)
부트스트랩이 불가능한 규모에서 저자들이 택한 길이 참고가 된다. 첫째, 재표본 대신 증거의 수를 센다. 각 갈림을 받치는 독립 편집이 몇 개인지가 지지도이고, 시간에 따라 어떻게 변하는지까지 같이 보고한다. 지지도가 가장 낮은 구간이 날짜 보정에서 외부 지식을 가장 많이 쓴 구간과 겹친다는 관찰은, 모형이 어디서 자료가 아니라 가정으로 버티는지를 짚어 준다. 둘째, 자료를 둘로 갈라 같은 분석을 따로 돌린다. 두 할구가 그 역할을 맡아 숫자가 아니라 순위가 재현되는지를 본다. 셋째, 귀무 분포를 느슨한 것과 빡빡한 것 두 가지로 돌린다. 잎 이름표를 전부 섞는 쪽과 같은 클론 안에서만 섞는 쪽을 모두 돌렸더니 농축의 크기는 줄었지만 결합 깊이의 순위는 그대로였고, 절대 날짜만 중앙값 0.75일 움직였다(보충 노트 S4). 그래서 저자들은 순위는 주장하고 절대 날짜는 주장하지 않는다. 살아남은 만큼만 말하는 보고 방식이다.
4. 빈 칸을 바깥 참조로 채울 때 생기는 순환 (방법론 교훈, 직접 적용)
내부 노드의 상태를 메우려고 저자들은 잎에서 뿌리 쪽으로 올라가며 자식들의 평균 전사체를 노드에 주고, 6시간 간격으로 쌓아 둔 발생 지도의 세포들과 상호 최근접 이웃으로 짝지어 유형을 투표로 정했다. 계통 관계는 전적으로 나무가 주고 지도는 동시대의 상태 후보만 댄다. 지도가 덮는 구간의 내부 노드 1,054,879개 가운데 926,852개(88%)에 이름표가 붙었다.
문제는 검증이다. 이렇게 얻은 상태 경로를 저자들이 전에 손으로 그린 세포 유형 전이 그래프와 맞춰 보니, 검증 가능한 단계 360개 가운데 160개(44%)가 그래프에서 바로 이웃한 두 상태를 잇고 207개(58%)가 두 변 안에 들어왔다. 우연보다 각각 15.7배, 7.4배다. 좋은 숫자이지만 이름표를 붙일 때 쓴 지도와 채점에 쓴 그래프가 같은 연구에서 나왔으니 독립된 검증은 아니고, 저자들도 그렇게 적어 뒀다(본문). 유사 라벨링(pseudo-labeling)으로 빈 곳을 메우고 같은 계열의 참조로 채점하는 일은 ML에서도 흔하다. 여기서 볼 만한 예방책은 셋이다. 이름표를 섞으면 일치가 0.06%로 무너진다는 음성 대조, 잎의 20%를 가린 뒤에도 이름표가 유지되는지 보는 안정성 검사, 검증이 독립이 아니라는 문장을 본문에 남기는 일.
한계와 남은 질문
- 배아 한 마리. 반복은 두 할구뿐이다. 테이프가 끼어든 자리 근처 유전자 91개 가운데 8개의 발현이 달라졌고, 특히 염색질 리모델러 Chd3는 세포 유형 20가지에서 발현이 낮아졌다(본문, 그림 S5). 이 교란이 나무에 준 영향은 한 마리로는 가릴 수 없다.
- 시계가 세 번 깨진다. 2세포기에서 원장 형성 사이에는 기록이 거의 쌓이지 않아 그 구간의 날짜는 자료가 아니라 상한이 잡고 있다. 세포 유형에 따라 편집 속도가 1.6배 범위에서 다르고, 느린 쪽은 거의 다 조혈 계통이다. 잎에 가까울수록 날짜가 과소 추정된다.
- 덧붙인 세포의 깊이. 뒤에 붙인 62만 개는 가까운 이웃이라는 뜻은 되지만 나무에서의 깊이까지 맞다고 보기는 어렵다고 저자들도 못 박았다.
- 표본은 10%, 공간은 없다. 가까운 두 잎이 실제 자매일 확률은 낮으므로 유형 일치율은 모두 하한이다. 위치 정보가 없어 E7.0의 시조들이 보이는 운명 편향이 진짜 운명의 차이인지 원장 배아 안에서 자리가 달라서인지도 가릴 수 없다.
- 용량. 테이프의 83%가 E13.5에 이미 찼다. 성체까지 적으려면 칸이 1,000개쯤 필요하다고 저자들은 셈한다.
열린 질문
- 잎이 100만 개를 넘는 계통수에서 최대우도나 베이즈 추론을 쓰려면 무엇을 포기해야 할까. 거리 기반 추론과 간이 지지도가 지금 어디서 가장 크게 틀리는지를 먼저 재야 한다.
- 기록 속도가 시기와 세포 유형에 따라 달라진다는 사실을 시계 모형 안에 넣으면 날짜와 위상이 얼마나 바뀔까.
- 개체마다 계통이 다른데 무엇을 재현된 결과라고 부를 수 있을까. 나무 사이에서 되풀이되는 구조를 정의하고 재는 방법 자체가 열린 문제다.
이해 확인
1. 테이프의 활성 칸을 늘 하나로 묶어 두면 무엇이 좋은가?
- 같은 칸을 여러 번 고쳐 쓸 수 있어 기록 용량이 늘어난다
- 편집 효소가 적게 들어 세포에 주는 부담이 줄어든다
- 쓴 차례가 칸 차례로 남고, 빈 자리가 줄어도 기록 속도가 잘 떨어지지 않는다
- 세포마다 같은 기호가 적혀 비교하기 쉬워진다
삽입은 활성 칸을 닫고 바로 다음 칸을 열므로 쓴 순서가 위치에 남는다. 칸 66개에 흩어져 적으면 자리가 차면서 기록 속도가 하루 8.8건에서 1.5건으로 떨어지지만, 활성 칸이 하나면 4.1건으로 평평하다(그림 2I를 같은 조건으로 다시 계산한 값).
2. 2세포기에 편집이 몰아친 일이 분석에 어떻게 쓰였나?
- 그 시기의 분열 속도를 재는 시계로 썼다
- 두 할구에 서로 다른 기호가 찍혀, 모든 세포를 어느 할구의 후손인지 갈라 두 벌의 반복 분석을 만들 수 있었다
- 편집 효소가 제대로 들어갔는지 확인하는 품질 검사로만 썼다
- 그 구간의 날짜를 정확히 매기는 데 썼다
A와 B 할구에 각각 23개와 19개의 편집이 찍혀 세포 99.0%를 둘로 나눌 수 있었고, 두 쪽의 나무를 따로 세워 같은 분석을 두 번 돌렸다.
3. 조상 계통 수에 상한을 건 까닭은?
- 계산량을 줄이려고
- 세포 유형마다 편집 속도가 달라서
- 뒤에 붙인 세포들의 깊이가 부정확해서
- 상한 없이 날짜를 매기면 E6.5에 조상 계통이 97,566개로 나오는데, 그때 배아에는 세포가 수백 개뿐이기 때문
그 구간은 기록이 거의 쌓이지 않아 시간 신호가 비어 있다. 상한은 배아 크기라는 바깥 지식으로 그 빈자리를 메우고, 최소제곱 목적함수는 1.8%만 나빠진다. 저자들은 상한이 필요하다는 사실을 시계가 깨진 구간의 표지로 읽는다.
논문 정보
- 논문: Qi Yu 외 20명 (교신 저자 Jay Shendure), “A DNA Typewriter records the cell lineage history of a mouse, from zygote to late organogenesis”, Science (2026년 10월 8일 온라인 게재). doi:10.1126/science.ael0508
- 같은 달의 자매 연구: W. N. Colgan 외, “Comprehensive lineage tracing maps the landscape of cell fate decisions in mouse embryogenesis”, Cell (2026). doi:10.1016/j.cell.2026.09.050
- 데이터: 벌크와 단일세포 서열 자료 NCBI GEO GSE341627
- 코드와 나무 파일: github.com/shendurelab/dtt-mouse, 대화형 탐색기 NextCell